Nature Reviews Molecular Cell Biology · 综述解读
大细胞外囊泡的“八大门派”:清华团队系统梳理 lEV 亚型、发生机制与功能
Towards a systematic understanding of the diverse subtypes, biogenesis and functions of large extracellular vesicles
黄玉伟、谢仁翔、马俊杰、俞立(清华大学)
题目:Towards a systematic understanding of the diverse subtypes, biogenesis and functions of large extracellular vesicles(系统认识大型细胞外囊泡的多样亚型、生物发生与功能)
期刊:Nature Reviews Molecular Cell Biology(2026,DOI: 10.1038/s41580-026-01021-8,2026-10-05 在线发表)
作者单位:西安交通大学基础医学院转化医学研究所;清华大学生命科学学院、膜生物学全国重点实验室、北京结构生物学前沿创新中心、北大-清华生命科学联合中心
文章类型:综述(Review)
通讯作者简介:俞立教授为迁移体(migrasome)发现者,2025 年创办迁移体医疗公司(Migrasome Therapeutics)
📌 一句话看懂
外泌体(exosome)之外还有一片“大”世界:直径超过 200 nm 的大型细胞外囊泡(lEV)几乎全部由质膜直接产生,包含凋亡小体、微囊泡、大癌小体、迁移体、外噬体(exopher)、线粒体囊(mitopher)、膜泡体(blebbisome)和衰老中性粒细胞大囊泡(LAND-V)八大亚型。这篇 NRMCB 综述首次系统梳理了它们的生物学特征、共同的发生机制(细胞骨架重排-膜重塑-信号调控)、货物分选与递送规律、生理与病理功能,并提出“操作性描述 + 发生学机制注释”的两层分类框架,为这个命名混乱、技术掣肘的领域提供了走向标准化研究的路线图。
▍本综述的核心框架
MISEV 2023 标准:按大小分为 sEV(<200 nm)与 lEV(>200 nm)▼
第一层:操作性描述(大小 / 分离方法)→ 第二层:发生学机制注释(有强证据时)▼
八大亚型
凋亡小体 / 微囊泡
大癌小体 / 迁移体
外噬体 / 线粒体囊
膜泡体 / LAND-V
货物与递送
膜相关 / 腔内货物
直接释放
受体细胞内化
命名之乱与 MISEV 2023:为什么需要 lEV 这个概念
细胞外囊泡(EV)研究领域长期饱受命名混乱之苦:exosomes、ectosomes、microparticles、oncosomes、migrasomes……同一类结构有多个名字,同一名字又指多种结构,跨研究比较几乎不可能。2023 年,国际细胞外囊泡学会(ISEV)发布 MISEV 2023 指南,给出划时代的操作定义:EV 是脂质双层包裹、不能复制的颗粒;分类采用操作性描述符——小 EV(sEV,<200 nm)与大 EV(lEV,>200 nm);而 “exosome” 等术语仅在生物发生路径被严格证实时才可使用。
与主要来自内体系统的 sEV 不同,绝大多数 lEV 直接来源于质膜。更重要的是,lEV 不是单一实体,而是一个横跨微米尺度、机制与功能千差万别的“大家族”。本综述正是以 ISEV 框架为纲,对 lEV 进行首次系统“人口普查”。
综述整合了经典与新近鉴定的 lEV 亚型,逐一给出大小、细胞来源与分子特征(附图 1 展示其形态多样性):
• 凋亡小体 apoptotic bodies(1–5 μm):程序性死亡细胞的膜泡化碎片,携带细胞器、DNA、RNA;标志物为剪切型 caspase-3/ROCK1/PANX1 和 Annexin V 阳性;
• 微囊泡 microvesicles(0.1–1 μm):质膜直接外向出芽,几乎所有细胞都释放,树突状细胞、巨噬细胞和小胶质细胞产量尤高;标志物 ARF6、KIF23、C1q 等;
• 大癌小体 large oncosomes(1–10 μm):阿米巴运动肿瘤细胞的巨型质膜突起脱落物,携带致癌蛋白与核酸,常用标志物 CK18;
• 迁移体 migrasomes(0.5–3 μm):生长于迁移细胞收缩纤维上的囊泡结构,内含大量小分泌囊泡;标志物 TSPAN4、ITGA5、CPQ、NDST1,可用麦胚凝集素(WGA)染色识别;
• 外噬体 Exopher(3–4 μm,可达 15 μm):应激诱导的气球状大囊泡,把受损线粒体和蛋白聚集体“扫地出门”,神经元与心肌细胞均可产生,尚无特异蛋白标志物;
• 线粒体囊 Mitopher(约 720 nm):秀丽隐杆线虫精子发生中发现的“单线粒体出口”——一个囊泡只装一颗健康线粒体,数秒内完成挤出,调控精子线粒体剂量与雄性生育力;
• 膜泡体 Blebbisome(5–20 μm):巨大动态膜泡,含功能细胞器但无核物质,释放后仍具运动性、可继续出芽释放更小囊泡——堪称“类细胞”的自主通讯中心;
• 衰老中性粒细胞大囊泡 LAND-V(>1 μm):衰老中性粒细胞主动脱落的大囊泡,表面富集 CD55 与 CD47,能抑制补体激活、促进炎症消退。
表 1 |主要 lEV 亚型速查(整理自原文 Fig.1 与 Supplementary Table 1)
| | | |
|---|
| | | cCASP3、cROCK1、cPANX1、Annexin V⁺ |
| | | |
| | | |
| | | |
| | | |
| | | |
| | | |
| | | |
▲ 作者特别强调:目前所有 lEV 标志物都不具备单一亚型特异性,上表信息应持“向前看”的态度使用,随认知更新而修订。
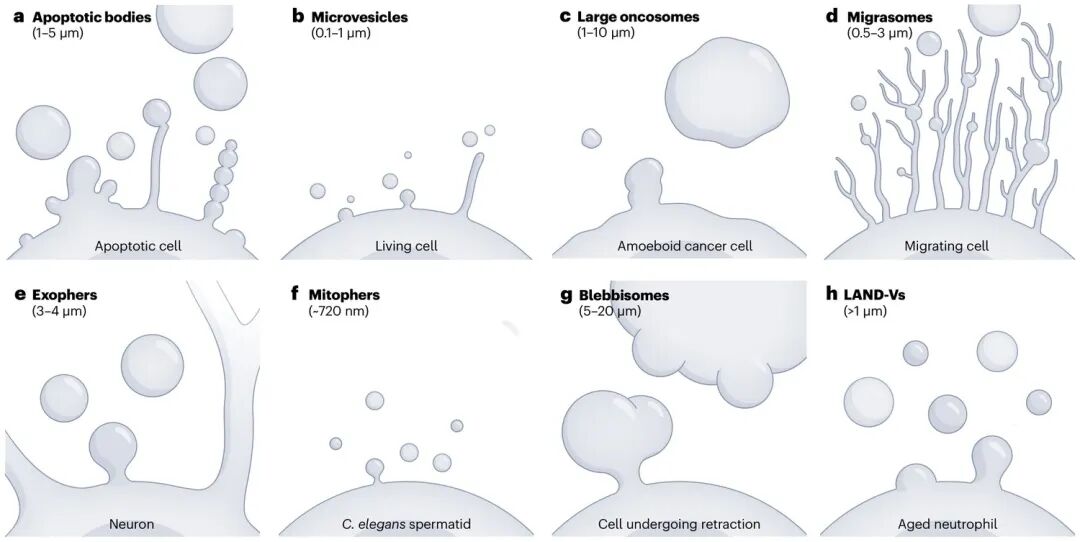
图 1 | lEV 形态多样性(原文 Fig.1):凋亡小体(apoptotic bodies)、微囊泡(microvesicles)、大癌小体(large oncosomes)、迁移体(migrasomes)、外噬体(exopher)、线粒体囊(mitopher)、膜泡体(blebbisome)与衰老中性粒细胞大囊泡(LAND-V)的生成方式与形态示意。
① 细胞骨架重排:lEV 大多产自质膜,肌动蛋白网络的解聚增加膜流动性,肌动球蛋白收缩提供出芽动力。凋亡细胞中,caspase-2/-3/-7 剪切 ROCK1 产生组成型活性片段,绕过 RhoA 直接驱动膜泡化与凋亡小体形成;乳腺癌中 RhoA–ROCK–LIMK 轴抑制 cofilin、增强收缩力,促进微囊泡释放;大癌小体则由 Rho GTPase 驱动的肌球蛋白收缩产生(DIAPH3 缺失可诱导)。
② 膜重塑:遵循“脂质组成与不对称性重排 → 膜微域形成 → 囊泡剪切释放”三部曲。钙离子激活 scramblase(如 TMEM16F、XKR8)使磷脂酰丝氨酸(PS)外翻,神经酰胺与鞘磷脂局部富集促进微囊泡出芽;胆固醇富集的脂筏是 LAND-V 的诞生地;四次跨膜蛋白富集微域(TEMs)在 Tspan4 棕榈酰化驱动下融合成微米级大结构域,构成迁移体的“骨架”。剪切机制上,微囊泡(microvesicles)依赖 ARF6/ARF1–肌球蛋白收缩,而迁移体(migrasomes)、膜泡体(blebbisome)、凋亡小体(apoptotic bodies)与外噬体(exopher)的断裂可能更多是被动物理过程。
③ 信号调控:RhoA–ROCK 通路是贯穿凋亡小体、微囊泡、大癌小体、LAND-V 与迁移体的“总枢纽”;Ca²⁺ 信号多层级参与——激活 scramblase、激活 calpain 切割骨架蛋白、以局部钙瞬变招募突触结合蛋白 Syt1 稳定迁移体前体。自噬与机械力也被认为参与特定亚型。
小结 1:细胞骨架重排提供“推力”,膜重塑决定“在哪里、以何种脂质构成”出芽,信号通路保证“何时”——三者叠加出 lEV 的多样性。
⚠️ 作者警示:现有机制研究大多基于少数哺乳动物细胞系与无脊椎动物模型,上述“共同主题”应视为工作假说而非普适定论——需在相同条件下对同一细胞的多个 lEV 亚型做系统并排比较(遗传 + 药理扰动)才能证伪或确立。
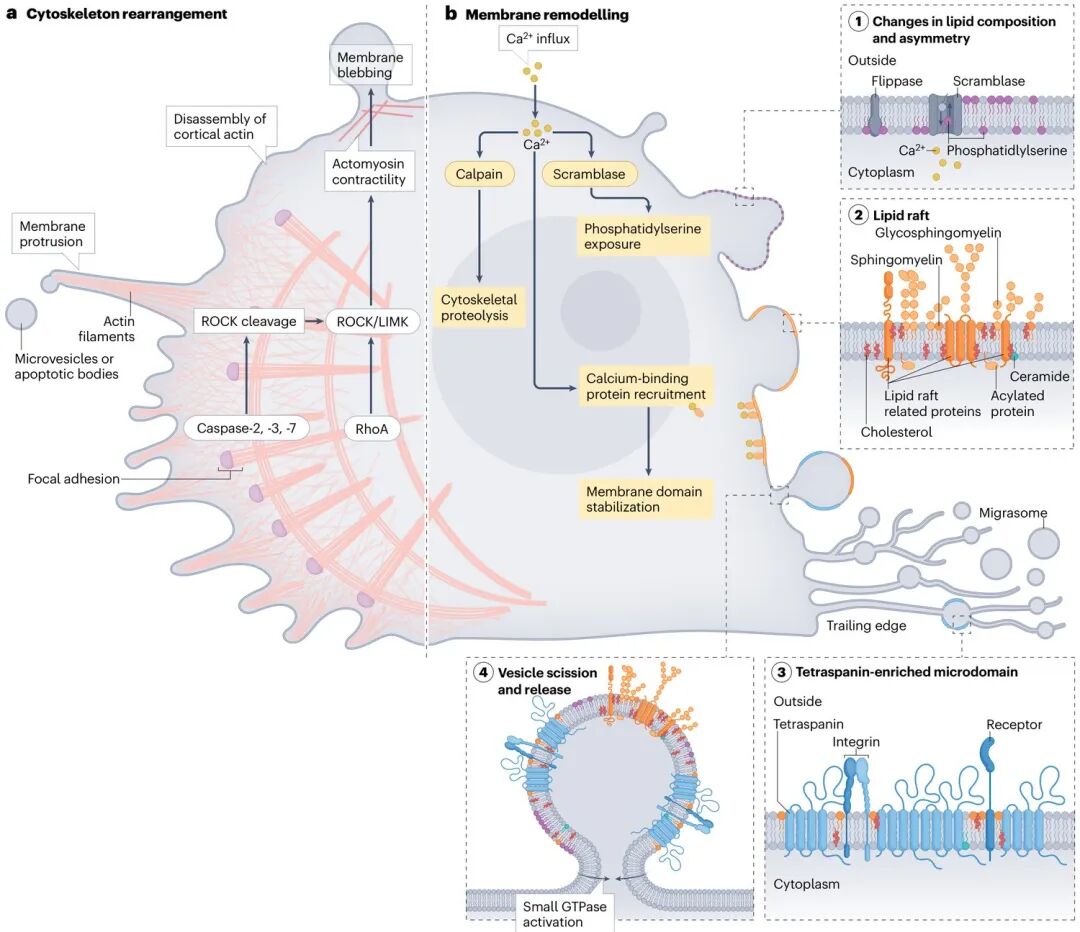
图 2 | lEV 生物发生的核心细胞机制(原文 Fig.2):a,细胞骨架重排(RhoA–ROCK 枢纽);b,膜重塑(脂质不对称性、脂筏、TEM 微域、囊泡剪切)。
膜相关货物:PS 外翻是凋亡小体的“吃我”信号;微囊泡富集 MMP14、组织因子、CD147、P-糖蛋白(ABCB1)、IDO1 等,关联侵袭、免疫抑制、血栓与耐药;迁移体(migrasomes)富集四次跨膜蛋白与整合素决定靶向定位;膜泡体(blebbisome)携带 PD-L1、PD-L2、B7-H3、VISTA、CD47 等免疫检查点蛋白;LAND-V 表面 CD55 负责抑制补体。
腔内货物:除常规蛋白、脂质、代谢物与核酸外,lEV 还有三类“特种货物”:① 细胞器——线粒体囊(mitopher)精准出口单颗线粒体,迁移体(migrasomes)经 KIF5B/MYO19 依赖途径装入轻度受损线粒体(mitocytosis),外噬体(exopher)优先装受损线粒体,膜泡体(blebbisome)广泛包裹多种细胞器;② 蛋白聚集体——外噬体(exopher)排出 polyQ 等毒性聚集体;③ 分泌囊泡——迁移体(migrasomes)腔内储存大量携带细胞因子的小囊泡,经 Rab8a/Rab10/Rab11、MYO5A 等系统定时释放。
递送路径:释放后 lEV 或直接释放内容物(迁移体的 SNARE 介导融合是典型),或被受体细胞以吞噬/巨胞饮方式内化(因颗粒大,不走网格蛋白或小窝途径);也可仅通过表面配体激活受体信号。内化后货物去向仍是悬案:多数进入溶酶体降解,少数经内体逃逸释放功能货物(如 L929 迁移体向多种癌细胞递送 PTEN 蛋白与 mRNA)。
小结 2:货物分选决定 lEV 的功能身份;但“EV 货物转移”模型的普适性仍存争议——不少研究显示内化后更多的是降解而非释放,功能性递送需要 Cre–Lox、分裂荧光素酶等严格体系支撑。
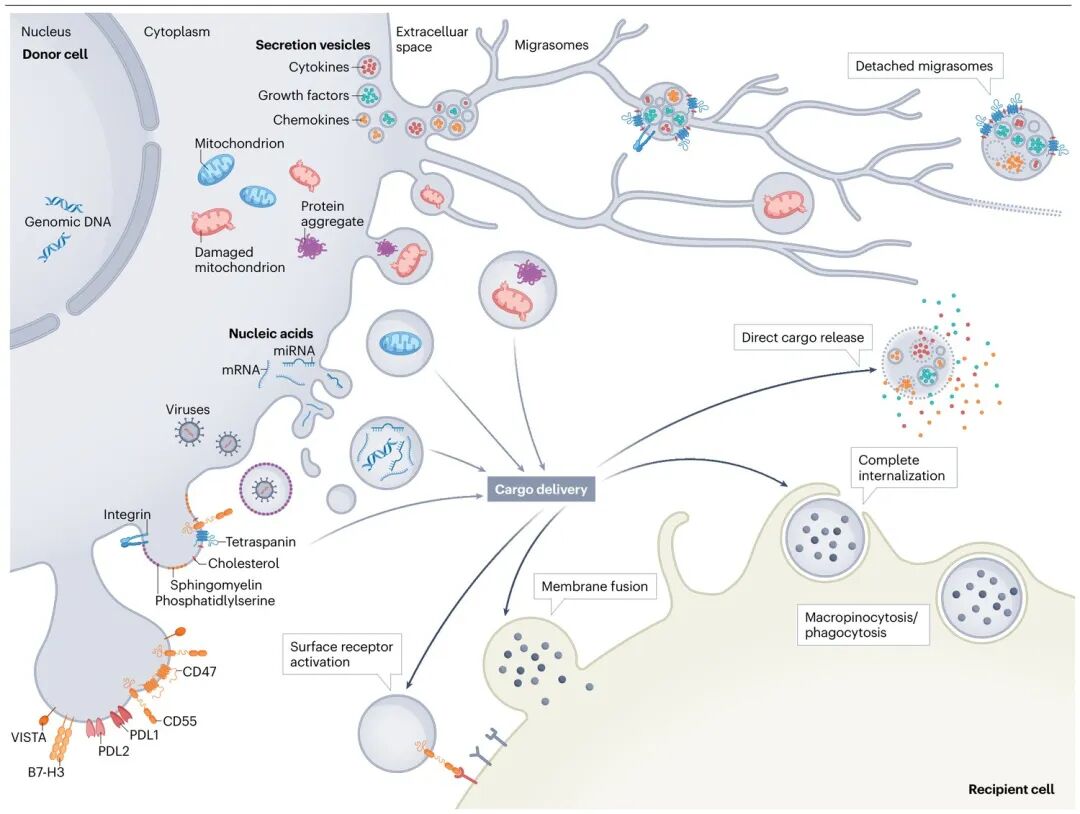
图 3 | lEV 货物分选与递送原则(原文 Fig.3):供体细胞的货物装载、释放后向受体细胞的直接释放 / 膜融合 / 巨胞饮内化三条途径。
综述将 lEV 的生理功能归纳为三种模式(附图 4):
模式一:细胞稳态维护。外噬体(exopher)在蛋白稳态系统过载时被“挤出”,清除毒性聚集体与受损线粒体,保护神经元存活;心肌细胞类似结构维持线粒体质量控制;线粒体囊(mitopher)解决线虫精子的“线粒体配额”问题——精子没有溶酶体,多余线粒体只能靠外排。
模式二:细胞间货物转移。内皮微囊泡(microvesicles)向成纤维细胞、免疫细胞与上皮细胞递送活性物质;凋亡小体不仅被清除,还刺激上皮干细胞增殖、耦联骨吸收与骨形成(RANKL–RANK)。
模式三:分泌信号平台。迁移体(migrasomes)是此中“明星”:附着时作为局部分泌枢纽建立趋化因子(CXCL12)与生长因子(VEGF-A)梯度,指导斑马鱼原肠胚器官形态发生与血管生成;脱落后转为“经典外泌型 EV”实现远距离释放;还参与生殖发育(递送 GDF3)、炎症部位细胞因子富集、凝血(富含胆固醇酯的“脂质支架”组装凝血因子)等。
小结 3:从“死亡细胞的残骸”到“活细胞的快递员与信号塔”,lEV 的功能版图正在快速扩张;但证据强度在不同亚型间差异很大——凋亡小体(apoptotic bodies)、微囊泡(microvesicles)、外噬体(exopher)与迁移体(migrasomes)证据较充分,其余亚型仍有大片空白。
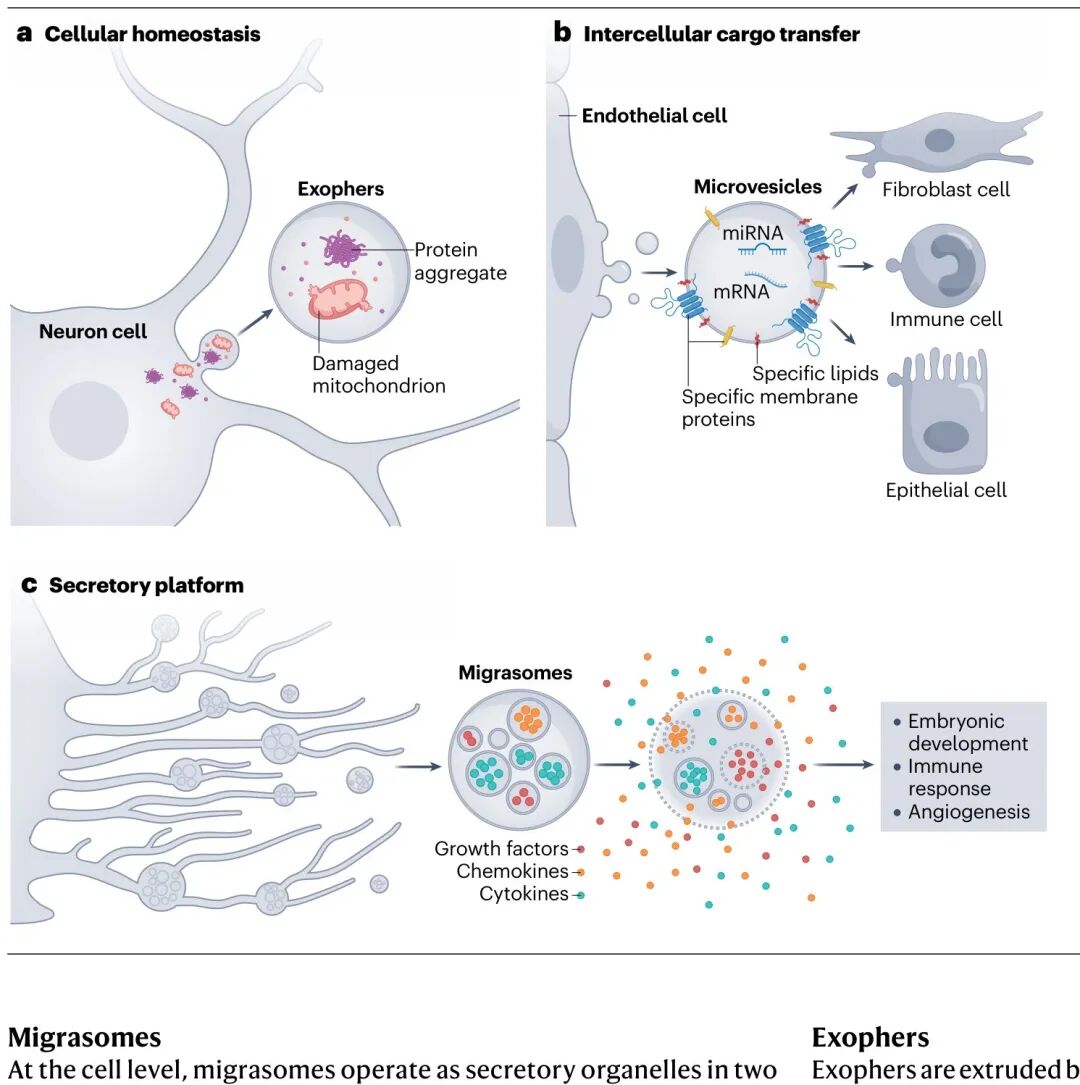
图 4 | lEV 的三种生理功能模式(原文 Fig.4):a,稳态维护(外噬体 exopher 排出受损细胞器);b,细胞间货物转移(微囊泡 microvesicles);c,分泌信号平台(迁移体 migrasomes释放生长因子 / 趋化因子 / 细胞因子)。
肿瘤:微囊泡(microvesicles)转移 EGFRvIII 致癌受体、携带组织因子促凝;大癌小体(large oncosomes)传播致癌 cargo 驱动转移;肿瘤膜泡体(blebbisome)用免疫检查点蛋白实施免疫逃逸;骨肉瘤迁移体(migrasomes)经 MFGE8 驱动巨噬细胞 M2 极化促进骨转移。
血栓与血管:组织因子阳性微囊泡(microvesicles)是强促凝颗粒(血小板微囊泡单位面积促凝活性是活化血小板的 50–100 倍),肺动脉高压与 ARDS 中血小板/内皮微囊泡(microvesicles)升高。
神经退行:小胶质细胞微囊泡把 Aβ 聚集体转化为可溶性神经毒性前纤维;脑淀粉样血管病中巨噬细胞迁移体(migrasomes)诱导小胶质细胞旁分泌衰老、经补体破坏血脑屏障;外噬体(exopher)清除失败导致毒性扩散。
感染与骨病:凋亡小体(apoptotic bodies)可被病毒“劫持”包装病毒颗粒;迁移体(migrasomes)甚至能包裹完整病毒实现跨受体传播;凋亡小体信号失调参与骨质疏松、骨关节炎与骨转移。
诊断前景(Box 1):循环凋亡小体是中风(72 h 内血浆水平预测梗死进展)、多发性硬化、帕金森病的无创标志物;CD171⁺ 神经元微囊泡的小 RNA 谱可区分帕金森患者;尿液迁移体(migrasomes)是肾小球损伤指标;血清大癌小体提示肿瘤侵袭状态。作者同时强调:lEV 异质性高、标志物不特异、靶分子丰度低,临床转化亟须标准化流程与超敏单囊泡检测平台(详见后文 Box 专栏翻译)。
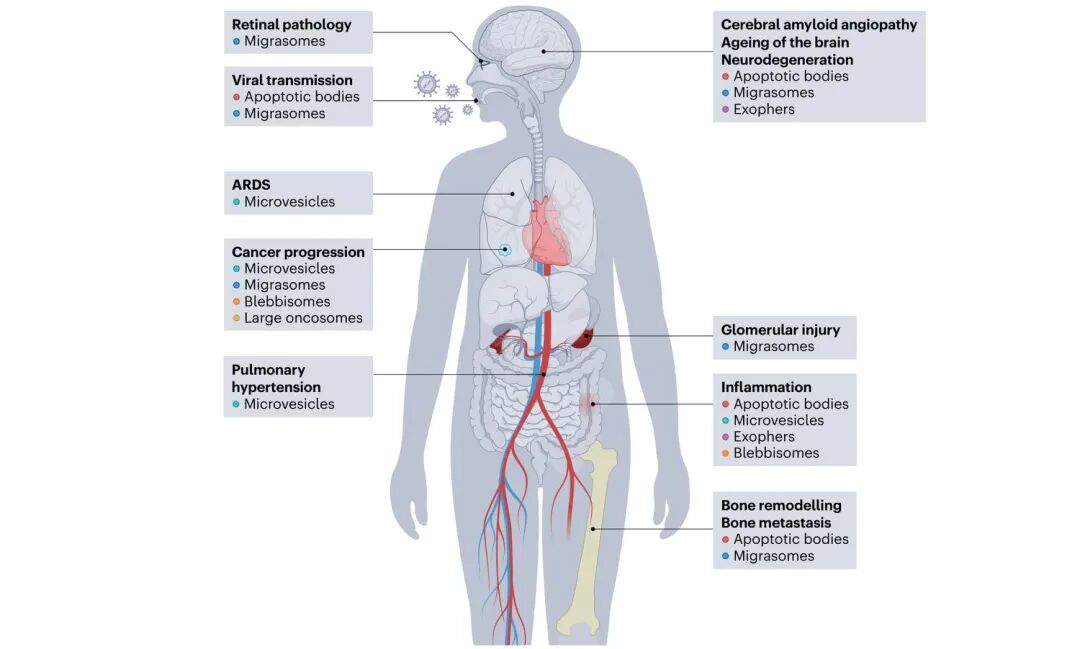
图 5 | lEV 在人类疾病中的病理角色全景(原文 Fig.5):覆盖视网膜病变、脑淀粉样血管病与脑衰老、神经退行、病毒感染、ARDS、肿瘤进展、肾小球损伤、炎症、肺动脉高压、骨重塑与骨转移。
概念与技术双重瓶颈:亚型间尺寸重叠、发生途径未明导致分类边界模糊;差速离心与共分离污染(蛋白聚集体、脂蛋白、病毒、细胞碎片)严重影响纯度;多数表征技术为 sEV 设计,对微米级、易碎、低浮力密度的 lEV 并不适配;体内追踪受肝脾肺快速清除、成像深度限制;功能研究中"囊泡特异效应"与可溶性因子、污染物效应难分彼此。
破局方向:分离上,密度梯度、尺寸排阻、切向流过滤、声学分选、微流控确定性侧向位移与免疫亲和正交联用;表征上,cryo-EM/冷冻电镜断层、原子力显微镜、高灵敏流式与成像流式、干涉散射(iSCAT)、单颗粒干涉反射成像传感器(SP-IRIS)多模态组合,辅以蛋白组/脂质组/糖组/核酸组全景分析;功能上,活体成像(光片、晶格光片)、透明动物模型、Cre–Lox 与分裂荧光素酶报告系统定量"货物是否真的进入胞质";关键一跃是找到各亚型生物发生特异基因——作者强调,loss-of-function 研究必须配合回补与功能获得实验,因为“发生基因”往往身兼他职。
📖 原文专栏|Box 1:lEV 的诊断前景(翻译整理)
尽管前景可观,lEV 走向临床诊断仍面临实质挑战:亚型高度异质、尺寸范围重叠、生物发生途径部分共享,使分离与分子表征复杂化;疾病相关分子在 lEV 内丰度通常很低,需要超敏单囊泡检测平台;分析前变异凸显跨实验室标准化流程的紧迫性。
令人鼓舞的是,单囊泡技术、高分辨率成像与整合多组学方法正在拆除这些障碍,提供临床转化所需的灵敏度与特异性。随着方法成熟,lEV 有望不仅给出疾病状态的静态分子快照,还能提供疾病进展与治疗应答的动态读出,成为精准诊断中强大的下一代液体活检平台。
具体而言:循环凋亡小体是中风、多发性硬化与帕金森的非侵入标志物,中风后 72 小时内血浆水平可预测梗死增长与预后;微囊泡在阿尔茨海默病(小胶质细胞来源、携带 Aβ/tau)、缺血性卒中(周细胞来源、早期升高)与帕金森病(CD171⁺ 神经来源小 RNA 谱)中均显示诊断价值;迁移体是肾小球损伤的尿液标志物并涉入缺血与视网膜病变;血清大癌小体与肿瘤侵袭状态相关。总体而言,这些结果彰显了 lEV 的诊断潜力,但临床转化仍待大规模验证与分离流程标准化。
📖 原文专栏|Box 2:将变革 lEV 研究的新兴技术(翻译整理)
计算光学成像:光场成像、自适应光学可从稀疏数据实现体积重建;光片显微镜薄层照明、光漂白极小;傅里叶叠层、结构光照明、无透镜全息与介观显微进一步拓展分辨率、通量与成像深度——得以在完整组织或流动体系中追踪迁移体、凋亡小体与癌小体的动态。
超敏蛋白质组:现可从皮克级囊泡输入进行深度蛋白组分析;单颗粒平台(干涉散射显微、SP-IRIS、高灵敏流式)分辨异质亚群;人工智能在降噪、分割、追踪与光谱分析中增强表征流程。
这些技术的汇聚正在把“时空成像”与“分子谱分析”连接起来,为解析 lEV 生物学与诊断潜力提供综合框架,有望克服可视化、分子表征与功能分析中的长期障碍。
综述的最终落点是提出一套可操作的两层 lEV 分类体系:
• 第一层(操作性描述):只报告大小或分离方法,保证可比性与透明度——这是所有研究的“底线要求”;
• 第二层(机制注释):当某一 lEV 的形成机制有强证据时,附加生物发生学注释;功能属性因情境而异,不宜作为稳定分类标准。随着知识增长,部分操作性类别将“升格”为机制明确的类别。
配合 MISEV 指南遵从、正交纯化、cryo-EM 与高灵敏流式表征、多组学 cargo 分析与 loss-of-function 功能验证这五大支柱,作者期待 lEV 研究能从“命名混战”走向“可重复、可比较、可转化”的成熟阶段。
① 从“追热点”到“建体系”。俞立团队的经历是绝佳范例:2015 年发现迁移体后十年间,持续产出机制(TEM 大结构域、棕榈酰化、mitocytosis)、功能(胚胎发育、凝血)与转化(疫苗平台、公司化),最终促成这篇领域“定框架”的综述。原创发现的价值,要靠体系化深耕兑现。
② 命名与标准是隐形的基础设施。“exosome”一词的滥用曾让整个领域付出代价;MISEV 2023 与两层框架提示我们:在寄生虫学等同样存在命名混乱的领域(虫株、期别、抗原命名),主动建立操作性定义 + 机制注释的双层标准,可能比急于发论文更有长远价值。
③ 大囊泡不是小囊泡的“放大版”。微米级 lEV 的分离、成像、定量都需专属技术(gentle 过滤、大孔径流式、低离心力方案),把 sEV 的方案平移过来必然踩坑——实验设计时务必先问“我的对象是谁”。
④ “货物转移”假说需要更严格的因果证据。内化 ≠ 递送,降解可能远多于释放。Cre–Lox、split-luciferase、Galectin-8 内体逃逸读出等体系,应成为 lEV 功能研究的标配对照——这对寄生虫-宿主互作中 EV 作用的研究同样适用。
主要参考文献(精选)
1. Huang Y, Xie R, Ma J, Yu L. Towards a systematic understanding of the diverse subtypes, biogenesis and functions of large extracellular vesicles. Nat Rev Mol Cell Biol. 2026. doi:10.1038/s41580-026-01021-8
2. Welsh JA, et al. MISEV 2023: from basic to advanced approaches. J Extracell Vesicles. 2024;13:e12404.
3. Ma L, et al. Discovery of the migrasome, an organelle mediating release of cytoplasmic contents during cell migration. Cell Res. 2015;25:24–38.
4. Melentijevic I, et al. C. elegans neurons jettison protein aggregates and mitochondria under neurotoxic stress. Nature. 2017;542:367–371.
5. Liu P, et al. Mitopherogenesis regulates sperm mitochondrial quantity and fertility. Nat Cell Biol. 2023;25:1625–1636.
6. Hsu AY, et al. Neutrophil-derived vesicles control complement activation to facilitate inflammation resolution. Cell. 2025;188:1623–1641.
7. Jeppesen DK, et al. Blebbisomes are large, organelle-rich extracellular vesicles with cell-like properties. Nat Cell Biol. 2025;27:438–448.
8. Jiao H, et al. Mitocytosis, a migrasome-mediated mitochondrial quality-control process. Cell. 2021;184:2896–2910.
本文为 AI 大模型驱动的翻译与解读,不当之处欢迎在评论区交流讨论、批评指正!
原文:Huang Y, Xie R, Ma J, Yu L. Nat Rev Mol Cell Biol (2026). doi:10.1038/s41580-026-01021-8
解读与编译:朝闻生命科学